详细内容
1. 果蝇的染色体组成
正常黑腹果蝇体细胞中含有8条染色体(2n=8),包括3对常染色体(2号、3号和4号,共6条)和1对性染色体。性别决定为X:A型(见第2节)。在描述性别决定时,常染色体单倍体组以A表示(每个A包含2、3、4号染色体各一条),因此二倍体个体的常染色体组成为AA。性染色体包括X染色体和Y染色体,但Y染色体在果蝇性别决定中的作用十分有限(见2.4节)。
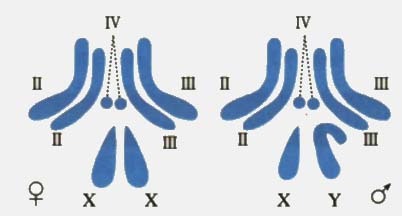
图1 果蝇染色体
2. 性别决定机制
果蝇的性别不是简单地由X、Y染色体的有无决定的,而是由X染色体数与常染色体组数的比值(X:A)决定的。这一机制由Bridges于1921年通过对异常染色体组成的果蝇进行分析首次证实。
2.1 雌性决定
当X:A = 1时,果蝇发育为正常雌性。例如,性染色体组成为XX的个体即为典型雌性;XXY个体(X:A仍为1)同样表现为可育雌性,但这类组合在自然界中较为罕见。
2.2 雄性决定
当X:A = 0.5时,果蝇发育为雄性。例如,性染色体组成为XY的个体即为典型雄性。此外,XO个体(只有一条X染色体而无Y染色体,X:A = 0.5)也表现为雄性,但由于Y染色体与雄性育性相关,XO雄蝇通常不育。
2.3 间性与超雌
当X:A介于0.5和1之间时,果蝇同时具有两性特征,这种现象称为间性(intersex),在自然界中出现频率较低。当X:A大于1时(如XXX,X:A = 1.5),个体发育为超雌(metafemale):生活力弱、不育,通常在羽化前后死亡。
2.4 Y染色体的作用
值得注意的是,果蝇的Y染色体与性别决定没有直接关系。与人类不同,果蝇的Y染色体不携带决定雄性性别的关键基因,其性别决定完全由X:A比值主导。Y染色体主要影响雄性的育性:它携带精子发生所需的生精基因,因此XY雄蝇可育,而XO雄蝇虽表现为雄性但不育。
3. 果蝇平衡子
3.1 平衡子原理
平衡子(balancer)这一概念最早由H. J. Muller提出,他还完成了果蝇遗传学的许多奠基性工作。Muller首先发现平衡染色体能够抑制其所在染色体区段的交换,并利用这一特性分离新染色体上的致死基因。由此确立了"多重倒位杂合体中,倒位区段几乎不与其同源染色体发生重组"这一原理。当平衡染色体上还携带显性标记基因时,它就成为分离分析和基因型定向合成中的有力工具。由于这些标记常为隐性致死或显性可见,平衡子为构建"平衡致死"(balanced lethal)品系提供了有效手段——在这类品系中,只有平衡子/致死突变的杂合体能够存活。
3.2 平衡子的特点
- 显性遗传标记:平衡子染色体上通常携带一个或多个显性标记,表型易于观察和识别,便于在后代中挑出携带平衡子染色体的个体。
- 抑制重组:平衡子染色体上分布着多个倒位,杂合状态下倒位区段与其同源染色体几乎不发生交换,从而将平衡子与其对应的突变染色体"锁定"在一起稳定遗传。
- 易于筛选:通过表型(如卷翅、棒眼、短刚毛等)即可方便地从大量后代中识别携带平衡子的个体,进而研究与之连锁的突变基因。
- 应用广泛:平衡子染色体广泛用于突变品系的维持、基因定位、基因功能研究和遗传作图等。
3.3 果蝇作为遗传学实验材料的特点
- 基因组相对简单:果蝇只有4对染色体,遗传分析较为简便。
- 生活周期短:25 ℃下从卵到成虫约10天,可快速繁殖、连续开展遗传实验。
- 繁殖率高:一对果蝇在适宜条件下可产生大量后代,实验材料充足。
- 易于饲养:饲养成本低,占用空间小,对环境条件要求不高。
- 遗传变异丰富:自然界和实验室积累了大量突变体与多态性位点,可供遗传研究使用。
- 遗传图谱清晰:果蝇的遗传学和细胞学图谱非常完善,许多基因和突变体的位置已经明确,便于基因定位和克隆。
3.4 平衡子的应用
平衡子可用于维持或研究多种遗传性状,例如:
- 形态学性状:如翅形、眼色等;
- 行为性状:如求偶、学习等行为;
- 生理性状:如代谢速率、寿命等。
在遗传研究中,除平衡子外,还有许多经典基因和性状被广泛研究,例如:
- 眼色基因:如white(w,白眼)、cinnabar(cn,朱砂眼)、brown(bw,褐眼)等;
- 体色基因:如yellow(y,黄体)、ebony(e,黑檀体)等;
- 翅形基因:如miniature(m,短翅)、vestigial(vg,残翅)、Curly(Cy,卷翅)等;
- 刚毛基因:如forked(f,焦刚毛)、singed(sn,卷曲刚毛)、Stubble(Sb,短刚毛)等;
- 性别决定基因:如X连锁的sex-lethal(Sxl)以及常染色体上的transformer(tra)、doublesex(dsx)等;
- 生物钟基因:如period(per)和Clock(Clk),影响果蝇的生物钟和行为节律;
- 神经与行为基因:如fruitless(fru),影响雄蝇求偶行为和神经系统发育。
3.5 常用平衡染色体
以下列出实验室常用的5种平衡染色体。各品系的细胞学图谱信息建议以FlyBase/Bloomington果蝇库的最新记录为准。
3.5.1 FM7a(X染色体平衡子)
- 基因型:FM7a, y31d sc8 vOf B1
- 显性标记:B1(Bar,棒眼)
- 隐性标记:y31d、sc8、vOf
- 细胞学:1Lt–1B2 | 20F–20A | 15D–20A | 15D–11F4 | 4E1–11F2 | 4D7–1B3 | 1Rt
- 注:FM7a/Y雄蝇可育。
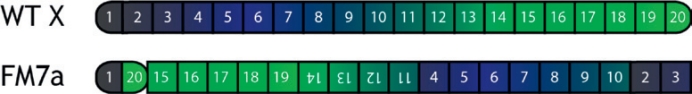
图2 平衡子 FM7a
3.5.2 CyO(2号染色体平衡子)
- 基因型:CyO, Cy1 dpv1 pr1 cn2
- 显性标记:Cy1(Curly,卷翅)
- 隐性标记:dpv1、pr1、cn2
- 细胞学:2L–22D1 | 33F5–30F | 50D1–58A4 | 42A2–34A1 | 22D2–30E | 10–42A3 | 58B1–2Rt
- 注:cn2是cinnabar(朱砂眼)的弱等位基因。

图3 平衡子 CyO
3.5.3 TM2(3号染色体平衡子)
- 基因型:TM2, Ubx130 emc2 Ubx130 e s
- 显性标记:Ubx130(平衡棒增大)
- 隐性标记:emc2、e、s
- 细胞学:3Lt–61A | 96B–93B | 89D–74 | 61C–74 | 89E–93B | 96A–3Rt

图4 平衡子 TM2
3.5.4 TM3(3号染色体平衡子)
- 基因型:TM3, ri1 vvlsep pp l(3)89Aa1 Ubx bx-34e e1
- 显性标记:Ser1(常与Sb1联合使用,即TM3,Sb)
- 隐性标记:ri1、vvlsep、pp、Ubx bx-34e、e1
- 细胞学:3Lt–65E | 85E–79E | 100C–100F2 | 92D1–85E | 65E–71C | 94D–93A | 76C–71C | 94F–100C | 79E–76C | 93A–92E1 | 100F3–3Rt

图5 平衡子 TM3
3.5.5 TM6B(3号染色体平衡子)
- 基因型:TM6B, Hu e1
- 显性标记:Hu(Humeral,肩鬃增多;最常与Tb1连用,很少与D3连用)
- 隐性标记:e1
- 细胞学:3Lt–61A1 | 87B2–86C8 | 84F2–86C8 | 84B2–84F2 | 84B2–75C | 94A–100F2 | 92D1–87B4 | 61A2–63B8 | 72E1–63B11 | 72E2–75C | 94A–92E1 | 100F3–3Rt

图6 平衡子 TM6B
3.6 果蝇的性状
果蝇的性状多种多样,包括但不限于以下几个方面:
- 体型:果蝇体型较小,身长一般3~4 mm;雌性通常比雄性稍大。
- 颜色:眼色(如红眼、白眼等)和体色(如灰色、黑色等)变异丰富,大多由特定基因决定。
- 腹部条纹:雌性腹部背面通常有5条均匀的深色条纹;雄性仅3条且不均匀,末段条纹极宽并延伸到腹面,形成明显的黑斑。
- 腹片:雌性可见腹片6节,雄性4节。
- 性梳:性梳是雄蝇特有的第二性征,着生于前足第一跗节上,是鉴别雄蝇最可靠的依据。
- 行为:求偶、交配、觅食等行为具有丰富的多样性,既受基因调控,也受环境影响。
3.7 果蝇常用基因型性状
下表汇总了实验室常用突变性状的基因、表型及所在染色体:
表1 常用突变性状表
| 性状分类 | 突变体名称 | 基因名称 | 基因缩写 | 表型特征 | 所在染色体 |
|---|---|---|---|---|---|
| 野生型 | — | wild type | + | 长翅、红眼、直刚毛 | — |
| 体色 | 黄体 | yellow | y | 体黄色 | X |
| 黑檀体 | ebony | e | 体乌木色 | 3 | |
| 眼色(形) | 白眼 | white | w | 复眼白色 | X |
| 橘黄眼 | Miniature white | w+(w[mC]) | 复眼橘黄色 | X | |
| 棒眼 | Bar | B | 复眼棒状 | X | |
| 杏核形光滑眼 | Glazed | Gla | 复眼杏核形,表面光滑 | 2 | |
| 翅形 | 短翅 | miniature | m | 双翅短小(与尾端等长) | X |
| 匙状翅 | nubbin | nub2 | 双翅小匙状 | 2 | |
| 残翅 | vestigial | vg | 只有翅的痕迹 | 2 | |
| 卷翅 | Curly | Cy | 双翅向上卷曲 | 2 | |
| 刚毛 | 焦刚毛 | singed | sn3 | 刚毛末端卷曲 | X |
| 短刚毛 | Stubble | Sb | 刚毛短,剪短状 | 3 | |
| 小盾片缺刚毛 | Scutoid | Sco | 小盾片缺刚毛 | 2 | |
| 多肩鬃 | Humeral | Hu | 肩鬃多根 | 3 | |
| 侧片鬃 | Sternopleural | Sp | 下前侧片中鬃加长 | 2 | |
| 其他 | 超双胸 | Ultrabithorax | Ubx | 平衡棒更大更圆、颜色更深,基柄具小毛 | 3 |
| 粗短蛹 | Tubby | Tb | 蛹粗且短 | 3 | |
| 短翅白眼焦刚毛 | — | m、w、sn3 | 短翅、白眼、焦刚毛(三突变,X连锁) | X |
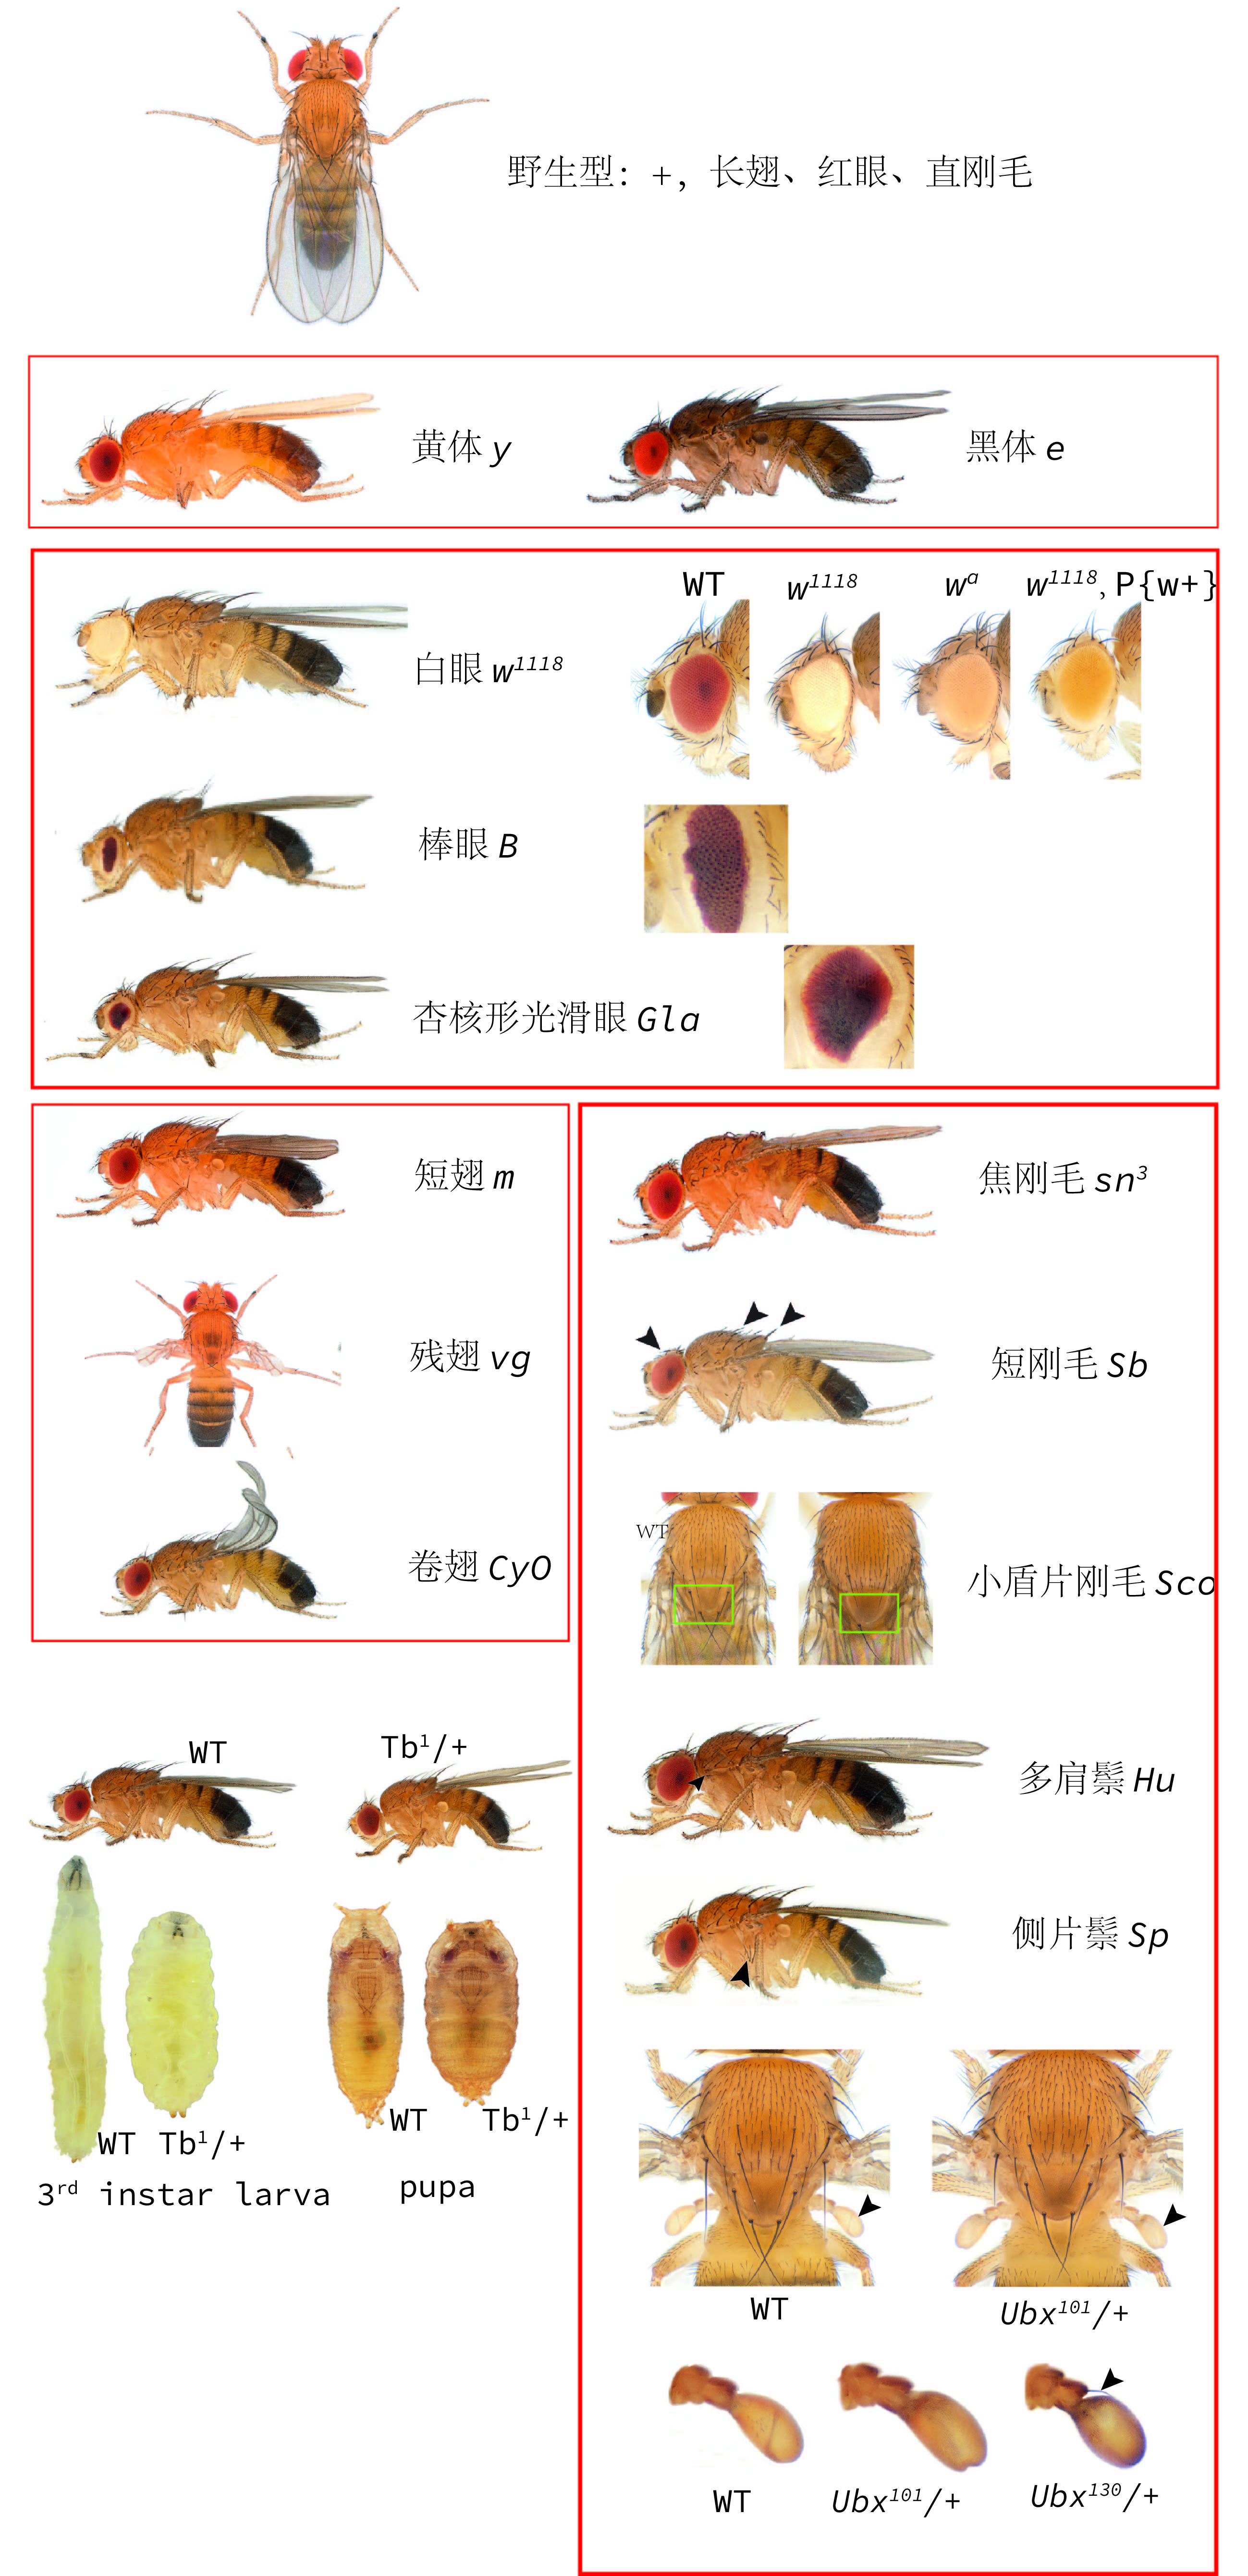
图7 m、w、sn3三突变品系表型示例
以下突变表型图集引自《Atlas of Drosophila Morphology: Wild-type and Classical Mutants》(Academic Press, 2013)及遗传学实验指导,按体色、眼睛、翅膀、毛、蛹五类对比展示。
3.7.1 体色
黄体(yellow,X连锁)
| 图 | 基因型(正规写法) | 基因型(其他写法) | 表型 |
|---|---|---|---|
| 图1 | + 或 y+ 或 y[+mDint] 或 y[+mDint2] 或 y[+t7.7] | — | 褐体(野生型) |
| 图2 | y[31d] 或 y[1] | y- 或 y | 黄体 |
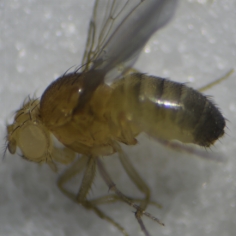
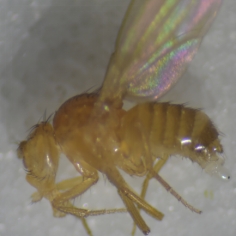
图8 黄体:(a) 野生型(褐体);(b) y突变(黄体)
黑体(ebony,3号染色体)
| 图 | 基因型(正规写法) | 基因型(其他写法) | 表型 |
|---|---|---|---|
| 图一、图四 | + 或 e+ | — | 褐体;背板规则区域黑色不明显 |
| 图2 | e[1] 或 e[s] | +/TM3、+/TM2、+/TM6B | 半黑体;背板小部分规则区域黑色明显 |
| 图三、图五 | e[1] 或 e[s] | TM3/TM6B、TM2/TM6B | 黑体;背板大部分规则区域黑色明显 |
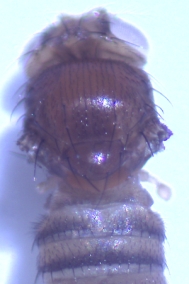
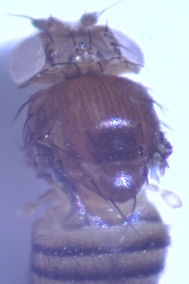
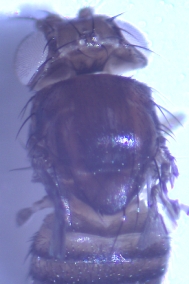
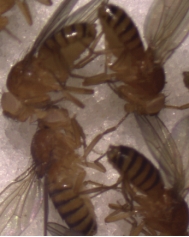
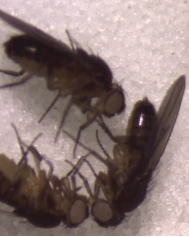
图9 黑体:(a) 野生型(+/+,褐体);(b) 半黑体(+/TM3);(c) 黑体(TM3/TM6B);(d) 野生型(不同角度);图9-e 黑体(不同角度)
3.7.2 眼睛
红眼位点(white,X连锁)marker对比
| 图 | 基因型(正规写法) | 基因型(其他写法) | 表型 |
|---|---|---|---|
| 图1 | + 或 w+ 或 w[+mW.hs] | — | 正红眼(中央有更深的暗红点) |
| 图2 | w[+mC] | miniWhite、miniW | 单拷贝为浅红眼/橘色眼;多拷贝为深红眼 |
| 图3 | w[*]、w[1]、w[1118]、w[67c23]等 | w-、w、w1118 | 白眼 |
注:w[+mC]等迷你白基因的眼色与拷贝数、性别和年龄相关。
棒眼(Bar,X连锁)对比
| 图 | 基因型(正规写法) | 基因型(其他写法) | 表型 |
|---|---|---|---|
| 图1 | + 或 B+ | — | 圆眼(野生型) |
| 图2 | B[1]/+ | FM7a/+ | 桃心眼或扁眼(杂合) |
| 图3 | B[1]/B[1] 或 B[1]/Y | FM7a/FM7a 或 FM7a/Y | 细眼或棒眼(纯合) |
注:FM7a是平衡染色体名称,为多突变基因集合。若FM7a处于白眼背景,其眼色略黄,这是其他基因突变所致,而非B基因的表型;例如FM7b仍带B[1],表型为棒眼但眼为白色。
玻璃眼(Bc,2号染色体)对比
| 图 | 基因型(正规写法) | 基因型(其他写法) | 表型 |
|---|---|---|---|
| 图1 | + 或 PPO1+ | — | 正常复眼,小眼规则排列 |
| 图2 | PPO1[Bc] | Bc | 复眼发育异常、界限不明显,整体呈玻璃状,轮廓非平滑椭圆 |
RFP荧光眼(外源标记基因)
| 图 | 基因型(正规写法) | 基因型(其他写法) | 表型 |
|---|---|---|---|
| 图一、图二 | + | RFP- | 无荧光 |
| 图三、图四 | 3xP3-RFP | RFP+ | 红色激发光 |
注:无激发光下RFP+个体呈淡粉色(见下右图),不同拷贝数有细微差别;若为正红眼背景,则激发光下荧光较弱,且主要见于头顶部位。
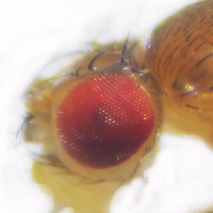
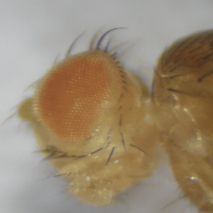
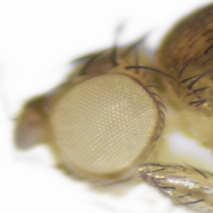
图10 红眼:(a) 正红眼(+,中央有暗红点);(b) miniWhite(w[+mC],单拷贝浅红/橘色眼);(c) 白眼(w1118)
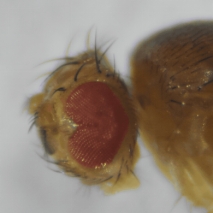
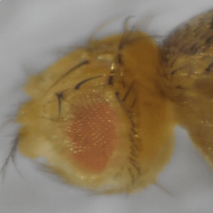
图11 棒眼:(a) 圆眼(野生型,B+);(b) 桃心眼(B[1]/+,杂合);(c) 棒眼(B[1]/B[1],纯合)
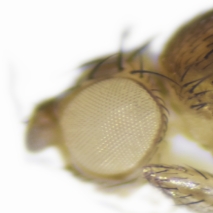
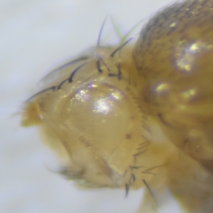
图12 玻璃眼:(a) 野生型(w1118,PPO1+,小眼规则排列);(b) Bc/CyO(PPO1[Bc],复眼发育异常,玻璃状)
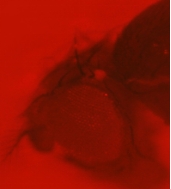
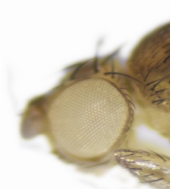
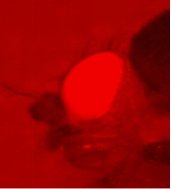
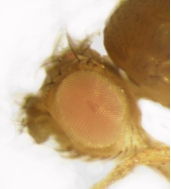
图13 RFP:图13a/b 无荧光(RFP-,白光/激发光);图13c/d 红色激发光(3xP3-RFP+,白光/激发光)
3.7.3 翅膀
卷翅(Curly,2号染色体)
| 图 | 基因型(正规写法) | 基因型(其他写法) | 表型 |
|---|---|---|---|
| 图1 | + 或 Duox+ | — | 平翅(野生型) |
| 图2 | Duox[Cy] | CyO | 卷翅 |
注:CyO是平衡染色体名称,为多突变基因集合。温度影响卷翅表型的形成:若蛹期(黑蛹阶段)处于低温(22 ℃以下),卷翅可能变平。此外,当CyO与其他带标记的染色单体组合(如Bc或Sp)时,卷翅表型可能不受影响,原因未知。
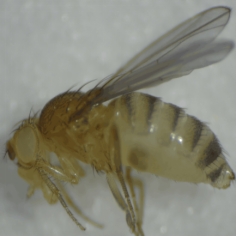
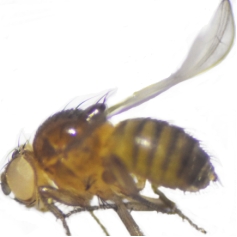
图14 卷翅:(a) 野生型(w1118,平翅);(b) Bc/CyO(Duox[Cy],双翅向上卷曲)
平衡棒(Ultrabithorax,3号染色体)
| 图 | 基因型(正规写法) | 基因型(其他写法) | 表型 |
|---|---|---|---|
| 图1 | + 或 Ubx+ | — | 平衡棒正常(红框圈出) |
| 图2 | Ubx[130] | TM2 | 平衡棒粗大,根部有一根黑毛(红框圈出) |
注:TM2是平衡染色体名称,为多突变基因集合,包含黑体、平衡棒增大等突变。
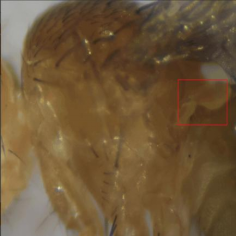
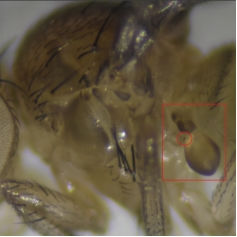
图15 平衡棒:(a) 野生型(Ubx+,平衡棒正常);(b) TM2(Ubx[130],平衡棒粗大,根部有一根黑毛)
3.7.4 毛
侧肩毛(Humeral,3号染色体)
| 图 | 基因型(正规写法) | 基因型(其他写法) | 表型 |
|---|---|---|---|
| 图1 | + 或 Antp+ | — | 侧肩毛正常,两根毛(U和L),呈八字形 |
| 图2 | Antp[Hu] | TM6B | 侧肩毛异常,毛较短,根数和排列不规则 |
注:TM6B是平衡染色体名称,为多突变基因集合,包含侧肩毛异常、黑体、粗短蛹等突变。
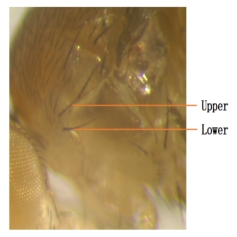
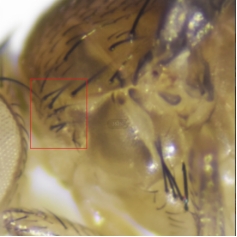
图16 侧肩毛:(a) 野生型(Antp+,两根毛呈八字形);(b) TM6B(Antp[Hu],侧肩毛异常,根数和排列不规则)
侧胸毛(Sternopleural,2号染色体)
| 图 | 基因型(正规写法) | 基因型(其他写法) | 表型 |
|---|---|---|---|
| 图1 | + 或 Wg+ | — | 侧胸毛正常,三根毛(A、M、P),中毛M最短,前毛A次之,后毛P最长,呈八字形 |
| 图2 | Wg[Sp-1] | Sp | 侧胸毛异常,长短、根数和排列不规则 |
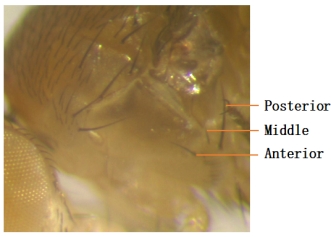
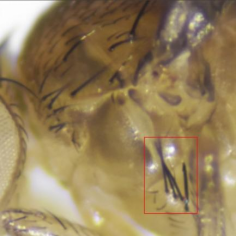
图17 侧胸毛:(a) 野生型(w1118,三根毛 A/M/P 呈八字形);(b) Sp(Wg[Sp-1],侧胸毛异常)
背毛(dorsocentrals、postalars、scutellars,3号染色体)
| 图 | 基因型(正规写法) | 基因型(其他写法) | 表型 |
|---|---|---|---|
| 图1 | + 或 Sb+ | — | 背毛较长 |
| 图2 | Sb[1] | TM3 或 TM3,Sb | 背毛较短 |
注:TM3是平衡染色体名称,为多突变基因集合。TM3本身并不携带Sb突变,其Sb[1]表型是由与其连锁的突变造成的。
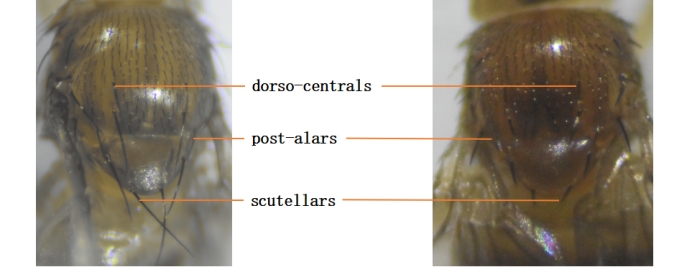
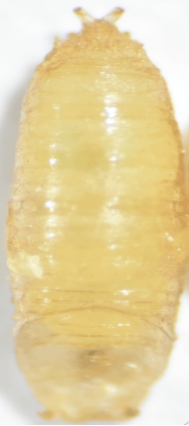
图18 背毛:(a) 野生型(Sb+,背毛较长);(b) TM3(Sb[1],背毛较短)
3.7.5 蛹
| 图 | 基因型(正规写法) | 基因型(其他写法) | 表型 |
|---|---|---|---|
| 图1 | + 或 Tb+ | — | 蛹长正常 |
| 图2 | Tb[1] | TM6B | 蛹粗短 |
注1:TM6B是平衡染色体名称,为多突变基因集合,包含侧肩毛异常、黑体、粗短蛹等突变。
注2:TM2、TM3和TM6B都是平衡染色体名称,均为多突变基因集合,且都携带e[1]或e[s]突变。因此,两条平衡染色单体组合(如TM2/TM6B)时,e基因突变纯合,黑体明显;只有一条平衡染色单体时(如+/TM2),e基因突变杂合,黑体不明显。
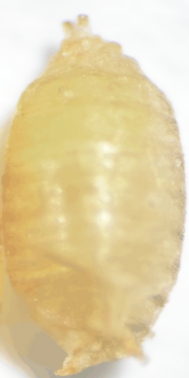
图19 蛹 野生型与TM6B对比
4. 分离定律、自由组合定律及杂交构建
4.1 遗传学分离定律
4.1.1 定义
分离定律(Law of Segregation)又称孟德尔第一定律,指出生物体细胞中控制同一性状的遗传因子成对存在、互不融合;在形成配子时,成对的遗传因子彼此分离,分别进入不同的配子中,随配子遗传给后代。
- 等位基因的分离:在形成生殖细胞(配子)的过程中,成对的遗传因子(等位基因)彼此分离,每个配子只获得其中一个。例如,某个体基因组中有一个来自父亲的A基因和一个来自母亲的a基因,形成配子时A与a分离,产生含A和含a两种类型的配子,比例相等。
- 配子的随机结合:受精时雌雄配子的结合是随机的。含A的配子可与含A或含a的配子结合,含a的配子亦然。这种随机结合是后代遗传多样性产生的原因之一。
- 显性与隐性:分离定律也解释了显性和隐性性状的表现。只要配子中含有显性基因(如A),后代即表现显性性状;只有当两个配子都含隐性基因(如a)时,隐性性状才会表现出来。
4.1.2 细胞学基础
基因位于染色体上。减数分裂时,同源染色体经复制后彼此分离,这是分离定律的细胞学基础。在杂合子细胞中,位于一对同源染色体上的等位基因具有相对独立性:减数分裂形成配子时,等位基因随同源染色体的分开而分离,分别进入两个配子,独立地随配子遗传给后代。
4.1.3 分离定律实例
- FM7a/Y雄蝇表型为棒眼,与野生型杂交后,平衡子发生分离:+/FM7a为桃心眼,+/Y为正常圆眼,可从表型直接判断分离情况。
- Bc/CyO表型为玻璃眼和卷翅,与野生型杂交后,+/Bc为玻璃眼平翅,+/CyO为正常眼卷翅,从眼睛和翅膀即可看出分离。
- TM2/TM6B为黑体,与野生型杂交后,+/TM2和+/TM6B均为褐体,分离后体色差异可见。
4.1.4 分离定律验证实验设计
实验材料:野生型长翅(+/+)和隐性翅突变(nub/nub)的黑腹果蝇品系,雌雄各5只,雌蝇为处女蝇。
注:nub(nubbin,匙状翅)为2号染色体上的隐性翅形突变。经典"残翅"突变是vg(vestigial);若需严格对应"残翅"名称,可将实验材料替换为vg品系,实验设计不变。
杂交实验:麻醉后按以下组合杂交:♀ nub/nub × ♂ +/+。将选好的雌蝇和雄蝇分别麻醉后放入装有食物的果蝇管中,记为P代,贴标签注明杂交组合、日期等信息,待果蝇苏醒后将培养管竖直放置。
培养与观察:将培养瓶置于适宜温度下饲养。7~8天后瓶中出现幼虫和蛹,此时移出亲本(麻醉后倒入废瓶),防止亲本与F1混杂。约11~13天后F1成虫羽化,仔细观察并记录F1代性状。
F1互交:将正交和反交得到的F1代各挑取10对,转入新培养瓶互交;瓶中出现幼虫和蛹后移除F1亲本。再经7~8天培养,F2成虫羽化。
F2结果统计:麻醉F2果蝇,在白纸上用放大镜观察各种表型并计数,每隔2天观察一次,连续3~4次;统计过的果蝇倒入废瓶。记录并计算各表型比例。
实验结果与分析:F1代无论雌雄均表现长翅(野生型)表型;F2代长翅与匙状翅(残翅类)分离比约为3:1,符合分离定律。
F1互交配子比例表
| F1♀配子 \ F1♂配子 | 1/2 + | 1/2 nub |
|---|---|---|
| 1/2 + | 1/4 +/+ | 1/4 nub/+ |
| 1/2 nub | 1/4 nub/+ | 1/4 nub/nub |
表型、基因型及比例预测
| 世代 | 表型 | 基因型 | 比例 |
|---|---|---|---|
| F1 | 长翅 | nub/+ | 100% |
| F2 | 长翅 | +/+ | 1/4 |
| F2 | 长翅 | nub/+ | 1/2 |
| F2 | 匙状翅(残翅类) | nub/nub | 1/4 |
单因子杂交表型观察记录表
| 观察结果与统计 | ♀ nub/nub × ♂ +/+ | |
|---|---|---|
| 长翅 | 匙状翅(残翅类) | |
| F1 | ||
| F2 | ||
| 比例 | ||
4.2 遗传学自由组合定律
4.2.1 定义
自由组合定律(Law of Independent Assortment)又称独立分配定律,指出具有两对(或更多对)相对性状的亲本杂交时,子一代形成配子的过程中,等位基因分离的同时,非同源染色体上的非等位基因表现为自由组合——即一对染色体上的等位基因与另一对染色体上的等位基因的分离或组合互不干扰,各自独立地分配到配子中。
- 不同基因对的独立分离:减数分裂中,位于非同源染色体上的基因对的分离互不影响。
- 配子的多样性:由于各基因对独立分离,生物体可形成多种配子组合。例如两对基因A/a和B/b,可形成AB、Ab、aB、ab四种配子,比例大致相同。
- 遗传变异的产生:配子多样性使同一对亲本可产生遗传组成不同的后代,这是自由组合定律解释生物变异来源的核心。
4.2.2 实质
自由组合定律的实质是非同源染色体上的非等位基因自由组合。它解释了自然界生物种类繁多的原因——世界上没有两个完全相同的个体。在医学实践中,可依据该定律分析家系中两种遗传病同时发生的情况,推断后代的基因型、表现型及其概率,为遗传病的预测和诊断提供理论依据。
4.2.3 自由组合实例
以2号染色体工具果蝇为例:红眼杂合体(w+/w)与2号平衡子品系Bc/CyO杂交,后代发生分离与自由组合,可得到:① w+/CyO;② w/CyO;③ w+/Bc;④ w/Bc等多种组合,且可从眼色和翅形表型直接分辨。
4.2.4 自由组合定律验证实验设计
实验材料:黑体长翅雄蝇(+/+;e/e)和匙状翅褐体处女蝇(nub/nub;+/+)各5只。
杂交实验:按以下组合杂交:♀ nub/nub;+/+ × ♂ +/+;e/e。麻醉后放入装有食物的果蝇管中,记为P代,贴标签注明杂交组合、日期等信息,待果蝇苏醒后竖直放置。
实验结果与分析:F1代无论雌雄均表现长翅褐体(野生型)表型(nub/+;e/+)。F1互交得F2,F2代中长翅褐体:长翅黑体:匙状翅褐体:匙状翅黑体 = 9:3:3:1,符合自由组合定律。
F2表型、基因型及比例预测
| 表型 | 基因型 | 比例 |
|---|---|---|
| 匙状翅褐体 | nub/nub;+/+ | 1/16 |
| 匙状翅褐体 | nub/+;+/+ | 2/16 |
| 匙状翅黑体 | nub/nub;e/e | 1/16 |
| 长翅褐体 | nub/+;e/+ | 4/16 |
| 长翅褐体 | +/+;e/+ | 2/16 |
| 长翅褐体 | nub/+;+/+ | 2/16 |
| 长翅褐体 | +/+;+/+ | 1/16 |
| 长翅黑体 | nub/+;e/e | 2/16 |
| 长翅黑体 | +/+;e/e | 1/16 |
双因子果蝇杂交观察统计结果
| 观察结果与统计 | ♀ nub/nub;+/+ × ♂ +/+;e/e | |||
|---|---|---|---|---|
| 长翅褐体 | 长翅黑体 | 匙状翅褐体 | 匙状翅黑体 | |
| F1 | ||||
| F2 | ||||
| 比例 | ||||
测交验证:在双因子杂交实验中,若F2性状比符合9:3:3:1,则初步支持自由组合定律。为进一步确认,可用测交观察F1代遗传给下一代时非等位基因是否确实自由组合。
- 实验材料:双因子杂交F1代长翅褐体雄蝇(nub/+;e/+),匙状翅黑体纯合处女蝇(nub/nub;e/e)。
- 杂交实验:♀ nub/+;e/+ × ♂ nub/nub;e/e,操作同前。
- 实验结果与分析:测交后代预期表型比为:长翅褐体:长翅黑体:匙状翅褐体:匙状翅黑体 = 1:1:1:1,进一步验证自由组合定律。
4.3 果蝇杂交构建
果蝇是遗传学实验最常用的材料之一,具有染色体数目少、拥有大量自然或诱发的可遗传突变性状、生活周期短、个体小、易于饲养等优点。以下是一个简化的果蝇杂交构建流程:
4.3.1 确定实验方案
根据实验目的选定合适的亲本果蝇并设计杂交组合。例如,可选择雌性白眼长翅果蝇与雄性红眼匙状翅果蝇杂交。
- 纯合子与杂合子:纯合子指某基因的两个等位基因相同的个体(如AA或aa),杂合子指两个等位基因不同的个体(如Aa)。杂交构建中通常先将纯合子品系杂交以产生杂合子后代。常用表示法:红眼/红眼(纯合子)、红眼/+(杂合子)、*/\*(纯合子)、*/+(杂合子)。
- 显性与隐性基因:显性基因在表型上可掩盖隐性等位基因;隐性基因只有在纯合状态下才表现。杂交构建中可通过后代表型判断性状的显隐性。
- 常用显性标记:本实验室常用的显性表型标记包括卷翅(CyO)、玻璃眼(Bc)、多肩鬃(TM6B,Hu)、短刚毛(TM3,Sb)等,均以大写字母开头的基因符号表示显性基因。
4.3.2 收集处女蝇
用于杂交的亲本雌蝇必须是未交配的处女蝇,以保证杂交按实验设计的路线进行(收集方法见《果蝇饲养与繁殖》第4节)。
4.3.3 配制杂交组合
将选定的亲本按设计好的组合接种。例如,将白眼处女雌蝇与红眼雄蝇放入同一培养瓶,于适宜温度下培养。
4.3.4 观察F1代
约7~8天后倒去亲本果蝇;再过4~5天,F1成蝇出现。观察F1代性状表现并记录相关数据。
4.3.5 兄妹交或自交
根据需要选择F1代进行兄妹交(sib mating)或自交。例如,挑取5对F1果蝇进行兄妹交,以观察F2代的性状表现。
4.3.6 观察F2代
约7~8天后F2成蝇出现。仔细观察F2代性状表现,统计不同表型的数目;对比F1与F2的性状表现及比例,即可验证分离定律和自由组合定律。
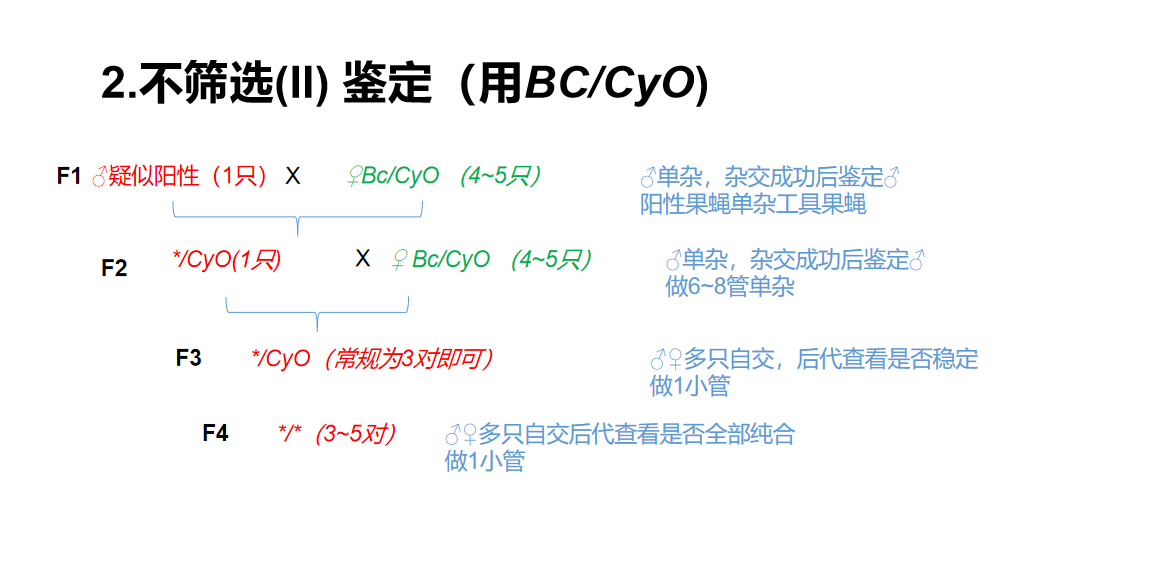
图20 常规稳定系杂交流程举例(2号染色体)
5. 连锁互换定律及重组构建
连锁互换定律(Law of Linkage and Crossing-Over)是遗传学三大定律之一,由摩尔根(T. H. Morgan)通过果蝇杂交实验得出。该定律揭示了同源染色体上的非等位基因在遗传给后代时的连锁和互换现象,对理解生物遗传的复杂性和多样性具有重要意义。
5.1 遗传学连锁互换定律
5.1.1 定义
连锁互换定律指出:减数分裂形成配子时,位于同一条染色体上的不同基因常连在一起进入配子,这种现象称为连锁(linkage);同时,减数分裂形成四分体时,同源染色体上的非姐妹染色单体之间有时会发生交换,导致基因重组(crossing-over),这种现象称为互换。
5.1.2 实质
连锁互换定律的实质是揭示了同源染色体上非等位基因在遗传过程中的连锁和互换现象。连锁和互换是生物界的普遍现象,也是造成生物多样性的重要原因之一。
5.1.3 遗传学意义
连锁互换定律对遗传学研究具有重要意义。它解释了为什么某些基因总是连在一起遗传,以及为什么有时会出现与亲代不同的基因组合,对理解生物的遗传机制、开展动植物育种和医学实践都有重要应用价值。
5.1.4 连锁互换定律实验设计(三点测交)
原理:位于同一条染色体上的基因一般随染色体一起传递,即这些基因是连锁的。同源染色体上的基因之间会以一定频率发生交换,使连锁关系改变,子代中出现一定数量的重组型;重组型出现的多少反映基因间交换频率的高低。本实验通过同一染色体上三个非等位基因的交换行为,验证基因在染色体上呈直线排列。m(短翅)、sn3(焦刚毛)、w(白眼)三个基因是X连锁连锁基因:先用野生型果蝇与三隐性果蝇(m、sn3、w)杂交制成三因子杂种,再将雌性杂种与三隐性个体测交。测交后代中,由于基因间交换可得到8种表型;经数据处理的重组值计算,一次实验即可测出三个连锁基因在染色体上的距离和顺序,绘制连锁图。
实验材料:野生型雄蝇(红眼、长翅、直刚毛,X⁺⁺⁺/Y)和三隐性雌蝇(白眼、短翅、焦刚毛,X^m sn3 w/X^m sn3 w)。亲本杂交雌雄各10只;测交实验提供三隐性雄蝇,雌蝇为处女蝇。
杂交实验:按以下组合杂交:♀ X^m sn3 w/X^m sn3 w × ♂ X⁺⁺⁺/Y。麻醉后放入装有食物的果蝇管中,记为P代,贴标签注明杂交组合、日期等信息,待果蝇苏醒后竖直放置。
培养与观察:置于适宜温度下饲养。7~8天后瓶中出现幼虫和蛹,移出亲本(麻醉后倒入废瓶),防止亲本与F1混杂。约11~13天后F1成虫羽化,观察并记录F1代性状。
测交:将F1代雌蝇转入新培养瓶,与三隐性雄蝇测交;瓶中出现幼虫和蛹后移除测交亲本。再经7~8天培养,F2(测交后代)成虫羽化。
F2结果统计:麻醉测交后代,在白纸上用放大镜观察各种表型并计数,每隔2天观察一次,连续3~4次;统计过的果蝇倒入废瓶。记录并计算各表型比例。
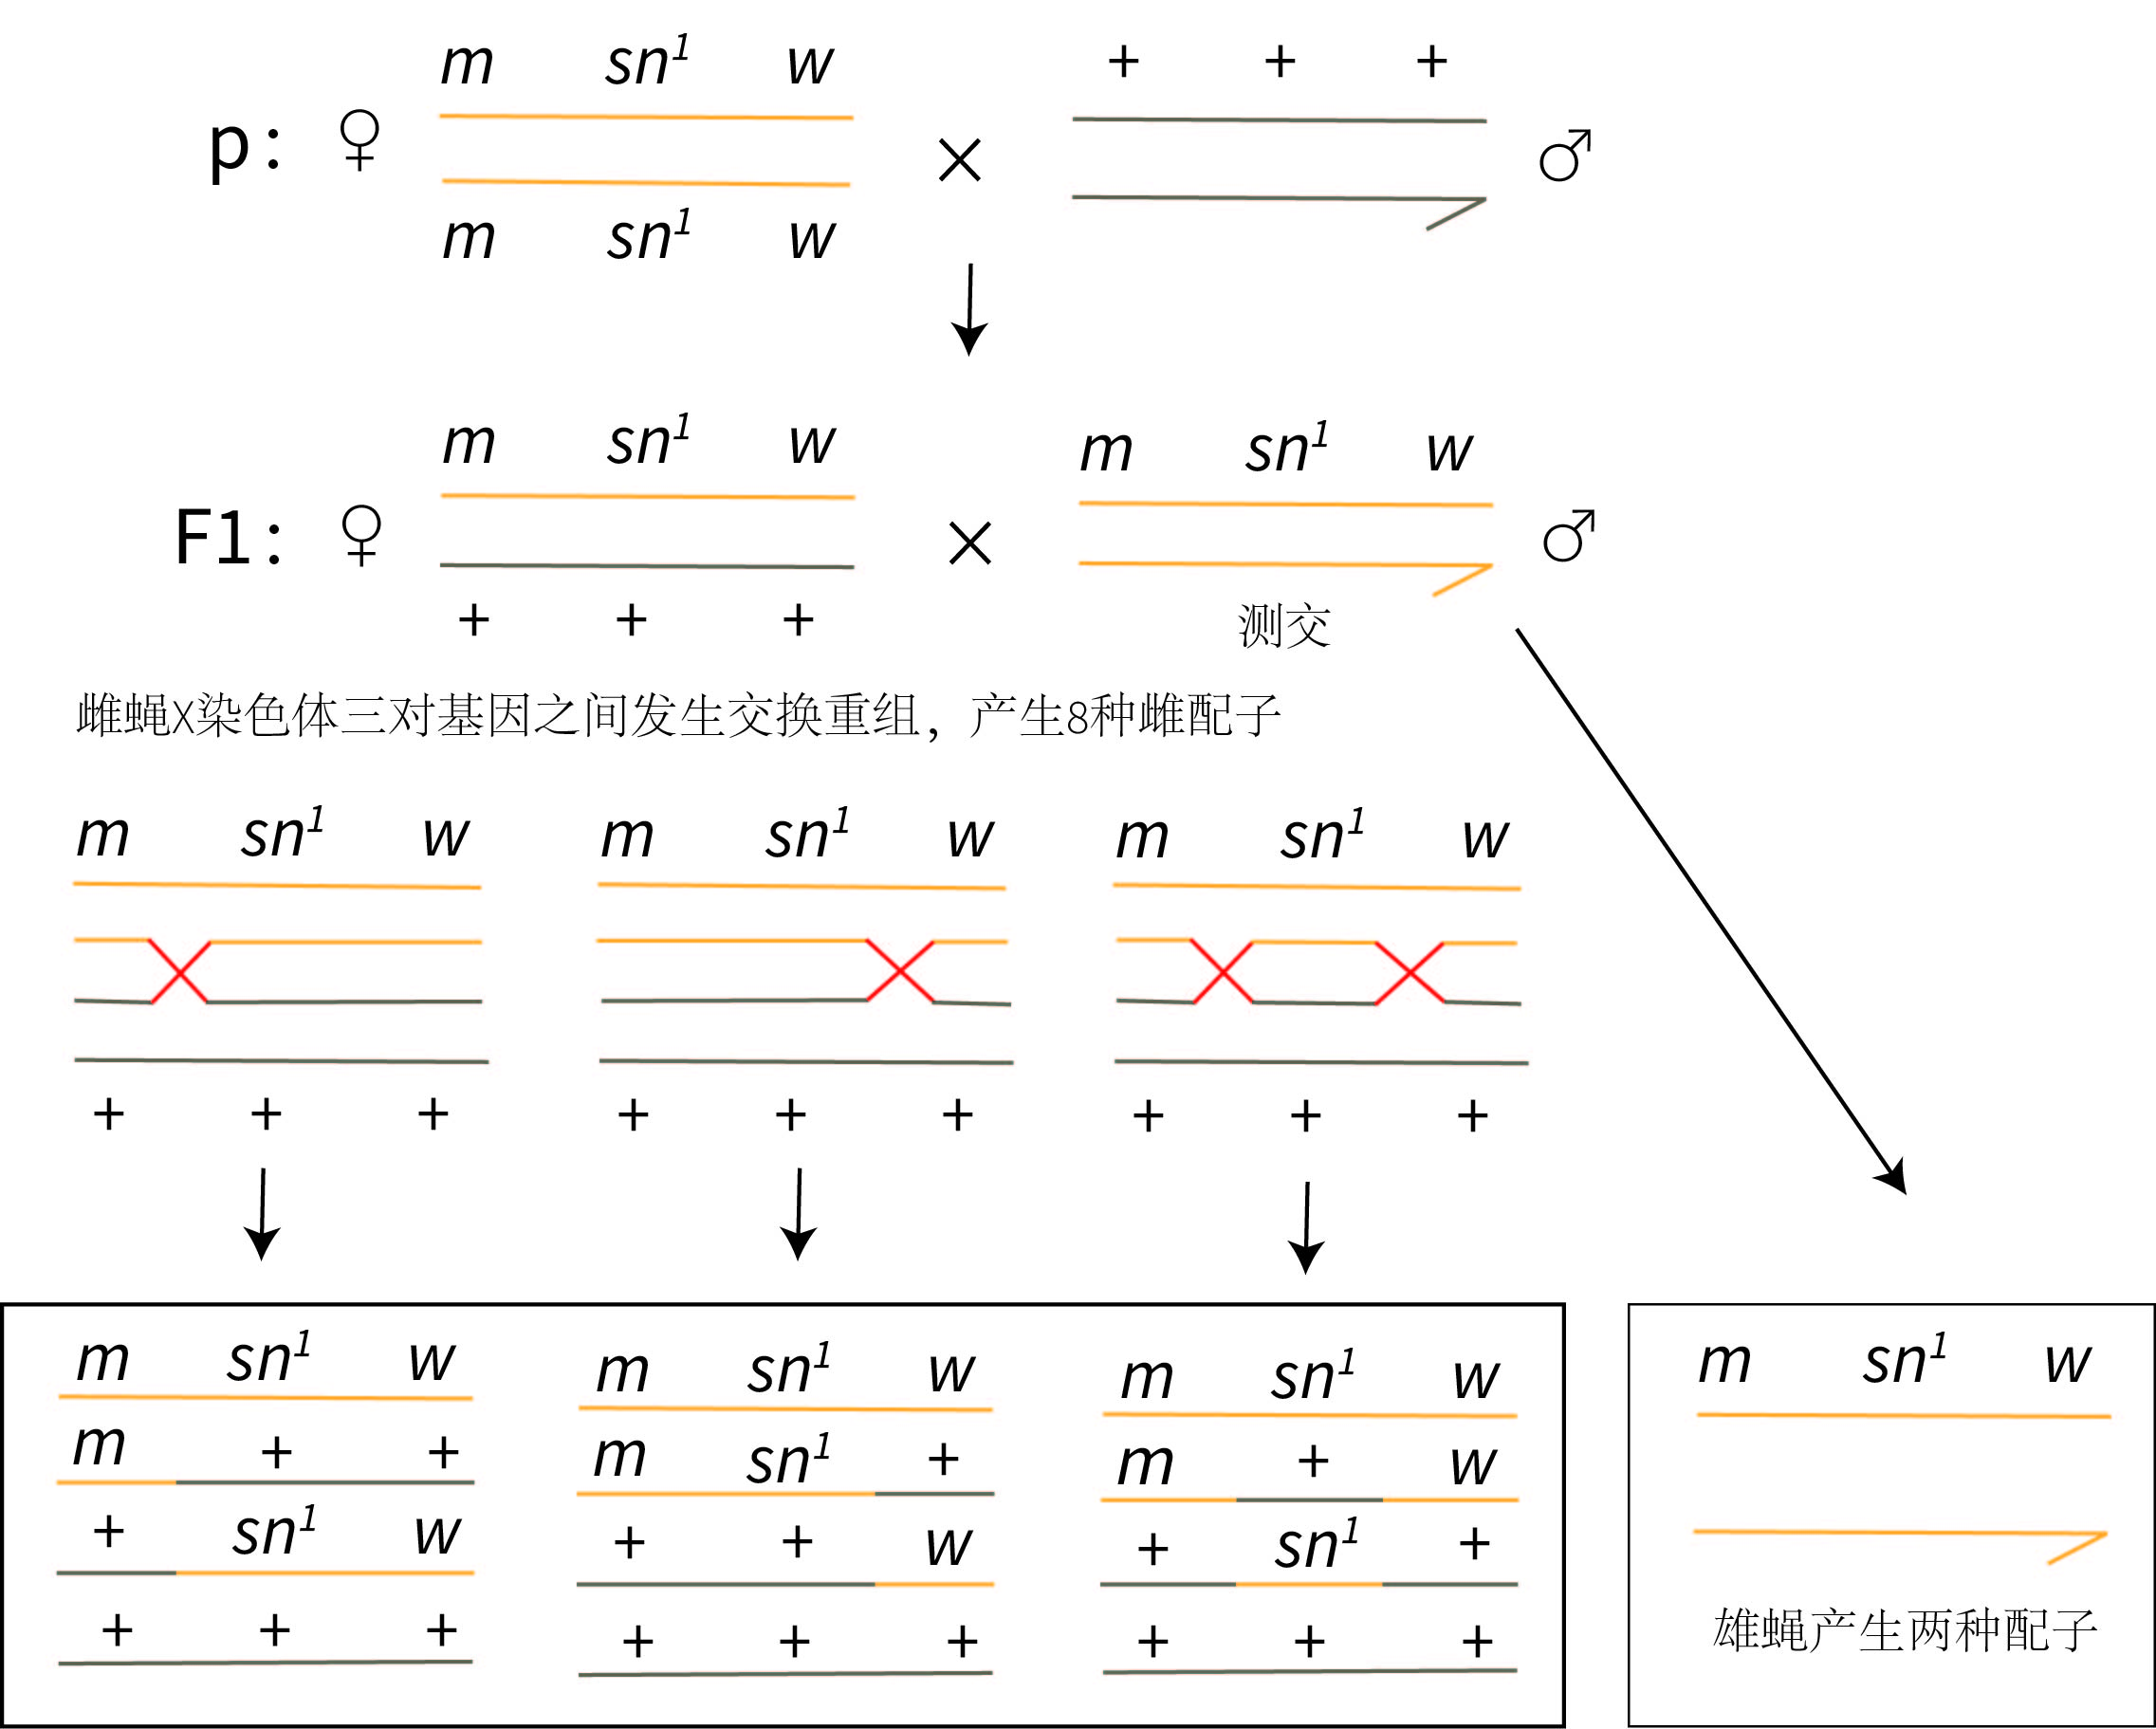
图21 三点测交杂交示意图
统计说明:测交后代中,雄性个体的表型直接反映F1雌蝇配子中X染色体的基因组成(雄蝇仅从母亲获得X染色体),而雌性个体的表型因携带两条X染色体而较为复杂。因此,F2统计只需统计雄性个体,即可更直接、更简便地分析X连锁隐性基因的遗传模式。
三点测交实验观察记录表
| 测交后代表型 | 观察数 | m–sn3 重组 | sn3–w 重组 | m–w 重组 |
|---|---|---|---|---|
| m sn3 w | ||||
| + + + | ||||
| m + + | ||||
| + sn3 w | ||||
| m sn3 + | ||||
| + + w | ||||
| m + w | ||||
| + sn3 + | ||||
| 总计 | ||||
| 重组值 |
三点测交实验数据统计
| 交换类型 | 基因型 | 表型 | 数目 | 合计 | 所占比例 |
|---|---|---|---|---|---|
| 无交换(亲本型) | m sn3 w | ||||
| + + + | |||||
| 单交换Ⅰ | m + + | ||||
| + sn3 w | |||||
| 单交换Ⅱ | m sn3 + | ||||
| + + w | |||||
| 双交换 | m + w | ||||
| + sn3 + | |||||
| 统计总数 | |||||
5.2 重组构建
在遗传学中,重组构建通常指通过特定的遗传操作手段(如杂交、转基因等)创造具有新性状组合的生物体或生物材料。在连锁互换定律的框架下,重组构建可通过以下方式实现:
5.2.1 杂交
选择具有不同优良性状的亲本进行杂交,利用连锁互换定律,使同源染色体上的非等位基因在杂交后代中发生重组,从而获得具有多个优良性状的新品系。
5.2.2 转基因技术
利用现代生物技术将外源基因导入受体生物的基因组并使其稳定遗传。转基因过程中,可通过特定的基因操作手段精确控制外源基因的插入位置和拷贝数,实现基因的重组和构建。
5.2.3 基因编辑
随着CRISPR/Cas9等基因编辑技术的发展,可以对基因组进行精确的编辑和修改,实现对特定基因的敲除、替换或插入等操作,从而实现基因的重组和构建。
5.3 连锁互换定律在重组构建中的应用
- 预测重组率:通过测量同源染色体上非等位基因之间的交换率(重组率),可预测杂交后代中出现新性状组合的概率,对育种中性状的组合与选择具有重要意义。
- 设计杂交组合:依据连锁互换定律设计合理的杂交组合,实现特定性状的组合与传递。例如,选择携带不同优良性状的亲本杂交,以期在后代中获得兼具多个优良性状的新品系。
- 优化转基因策略:在转基因过程中,可利用连锁与重组原理优化外源基因的插入位置和拷贝数,通过选择合适的操作手段和条件,实现外源基因的精确插入和稳定遗传。
6. 果蝇基因型及杂交图书写规范
6.1 果蝇基因型书写规范
- 基因名称和符号:果蝇基因符号用斜体。以隐性突变表型命名的基因,符号全部小写(如white → w、ebony → e、kiss → kis);以显性(野生型)表型命名的基因,首字母大写、其余小写(如Bar → B、Curly → Cy)。蛋白质名称不用斜体,首字母大写、其余小写。
- 性染色体表示:果蝇性别由X染色体数与常染色体组数之比决定(见第2节),雌性含两条X染色体,雄性含一条X染色体和一条Y染色体。基因型中的性染色体用X和Y表示。
- 等位基因表示:通用遗传学教学中,等位基因常用同一字母的大小写区分(如B和b分别代表显性、隐性等位基因)。果蝇专用命名中,等位基因则以基因符号加上标表示,如w1118、B1、e1、Cy1等。
- 基因型书写:雌蝇基因型写作X^B X^b或X^B X^B;雄蝇写作X^b Y 或 X^B Y。
6.2 果蝇遗传学命名的简化规则
果蝇遗传学命名可归纳为几条简单规则,下面举例说明:
示例:f; cn bw; TM2/tra
- 只写突变染色体的基因型:染色体按X/Y;2;3;4的顺序排列。上例中f;cn bw;TM2/tra分别对应X染色体、2号染色体和3号染色体。
- 斜体规则:基因(型)一般用斜体表示;突变体(品系)名称一般不用斜体。
- 基因缩写:突变基因缩写一般不超过3个字母。f代表forked(焦刚毛),影响刚毛形态;cn代表cinnabar(朱砂眼),bw代表brown(褐眼),二者都影响眼色,共同作用时形成白眼;TM2指3号染色体平衡子(third multiple #2);tra指transformer,参与性别决定。
- 分号与逗号:基因符号间的分号(;)表示不同的染色体。重排染色体(如平衡子)后面的逗号表示后续基因位于同一染色体上——例如TM2的全称是TM2, Ubx…,因为它携带一个突变的Ultrabithorax等位基因。
- 纯合与杂合的书写:染色体基因型写成一行表示该基因型为纯合;杂合体写成两行,每一行对应一条同源染色体。
- 未写明的均为野生型:例如f表示X染色体携带forked突变等位基因,X染色体的其他位点视为野生型;杂合状态下只需标出每条染色体上的突变位点。
6.3 杂交图书写规范
- 符号使用:用P(亲代)、F1(子一代)、F2(子二代)等符号表示杂交的不同世代;杂交符号"×"表示杂交过程,箭头"→"或"↓"表示遗传给下一代。
- 配子表示:杂交图中应明确标出亲本产生的配子种类及其基因型。例如,X^B X^b雌蝇产生X^B和X^b两种配子,X^b Y 雄蝇产生X^b和Y两种配子。
- 子代基因型和表现型:应详细列出子代每种基因型及其比例和表现型。例如,X^B X^b × X^b Y 的F1代:X^B X^b(红眼雌性)、X^b X^b(白眼雌性)、X^B Y(红眼雄性)、X^b Y(白眼雄性),比例为1:1:1:1。
- 纯合子与杂合子:纯合子的两个等位基因相同(如AA、aa),杂合子的两个等位基因不同(如Aa)。常用表示法:红眼/红眼(纯合子)、红眼/+(杂合子)、\*/\*(纯合子)、\*/+(杂合子)。
- 基因顺序:表示基因型时,按染色体编号从左到右依次书写。例如:FM7b/FM7b;Sp/CyO;TM2/TM6B,从左往右依次为X(1号)、2号、3号染色体。
- 图表格式:可用棋盘式遗传图解(Punnett square)清晰表示杂交过程和子代情况:横行代表雌性配子,竖行代表雄性配子,每个格子代表一种可能的子代基因型和表现型。
- 注意事项:
- 杂交图中应明确标出亲本的基因型和表现型;
- 子代的基因型和表现型应写全,并注明比例;
- 若存在致死现象或特殊遗传规律(如伴性遗传),应在图中明确标出。
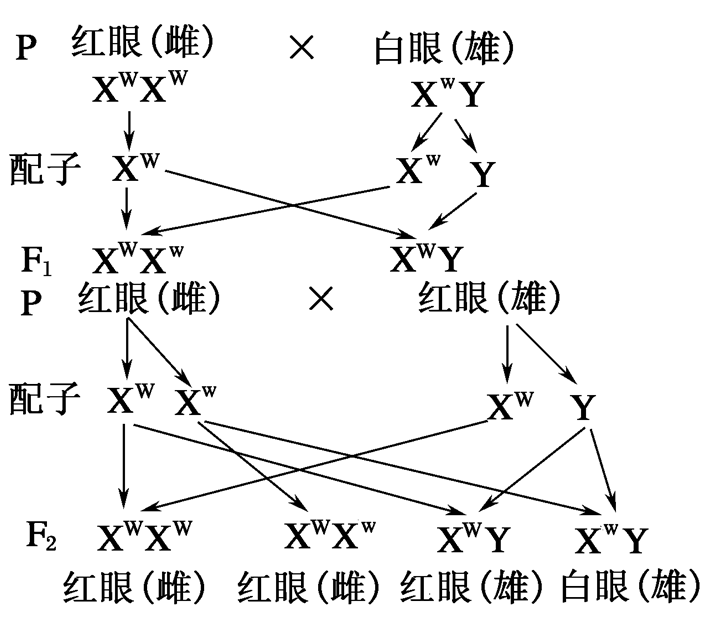
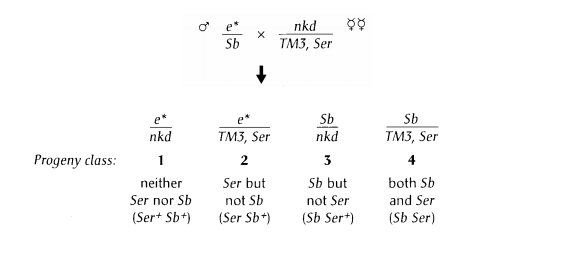
图23 果蝇杂交图示意(续)
图22 果蝇杂交图示意
← 返回理论和技术资料